Una investigación propone nuevos criterios para el desarrollo de plaguicidas.
Los científicos abogan por moléculas con múltiples objetivos y menor susceptibilidad a la resistencia por parte de malezas, insectos y patógenos.
04.11.2026 | 09:46 (UTC -3)
Revista Cultivar
Los avances en el modelado computacional de proteínas están ampliando las posibilidades para desarrollar plaguicidas con nuevos mecanismos de acción. Sin embargo, la elección de las dianas moleculares sigue siendo crucial para la eficacia del producto y la reducción del riesgo de resistencia. Jonathan Gressel, del Instituto Weizmann de Ciencias en Israel, y Stephen O. Duke, de la Universidad de Mississippi en Estados Unidos, han recopilado siete criterios para guiar esta selección.
Los investigadores destacan el potencial de herramientas como AlphaFold, que ha sustituido a la cristalografía de rayos X en la visualización de estructuras proteicas, y algoritmos patentados de diseño molecular. Estas tecnologías permiten el desarrollo de moléculas pequeñas y péptidos capaces de interactuar con regiones que antes se consideraban inaccesibles. Este avance amplía el abanico de posibles objetivos para herbicidas, fungicidas e insecticidas. Dado que los herbicidas representan la mayor parte del volumen, la superficie tratada y el valor de mercado, la mayoría de los ejemplos citados se refieren a malas hierbas.
Históricamente, el descubrimiento de plaguicidas se ha basado en el análisis aleatorio de compuestos químicos, con la excepción de los productos desarrollados a partir de moléculas naturales. Los objetivos moleculares de casi todos los plaguicidas pioneros con un nuevo mecanismo de acción eran desconocidos en el momento de su lanzamiento comercial. Si bien los organismos eucariotas considerados plagas poseen más de 10 000 proteínas diferentes, solo una pequeña fracción constituye el objetivo de los productos disponibles.
Según Gressel y Duke, la selección de nuevos objetivos debe tener en cuenta la posibilidad de que evolucione la resistencia. Las moléculas capaces de inhibir enzimas esenciales no siempre son eficaces en el organismo. Además, las alteraciones genéticas pueden reducir la sensibilidad de los objetivos o aumentar la capacidad de degradación de los compuestos.
La presencia de múltiples objetivos puede dificultar la resistencia.
Una de las principales recomendaciones consiste en el desarrollo de moléculas capaces de actuar sobre dos o más dianas moleculares. Esta característica reduciría la probabilidad de resistencia asociada a mutaciones específicas. Según la estimación de los autores, si la resistencia a una sola diana aparece en diez años, la necesidad de mutaciones simultáneas en dos dianas aumentaría este plazo a cien años.
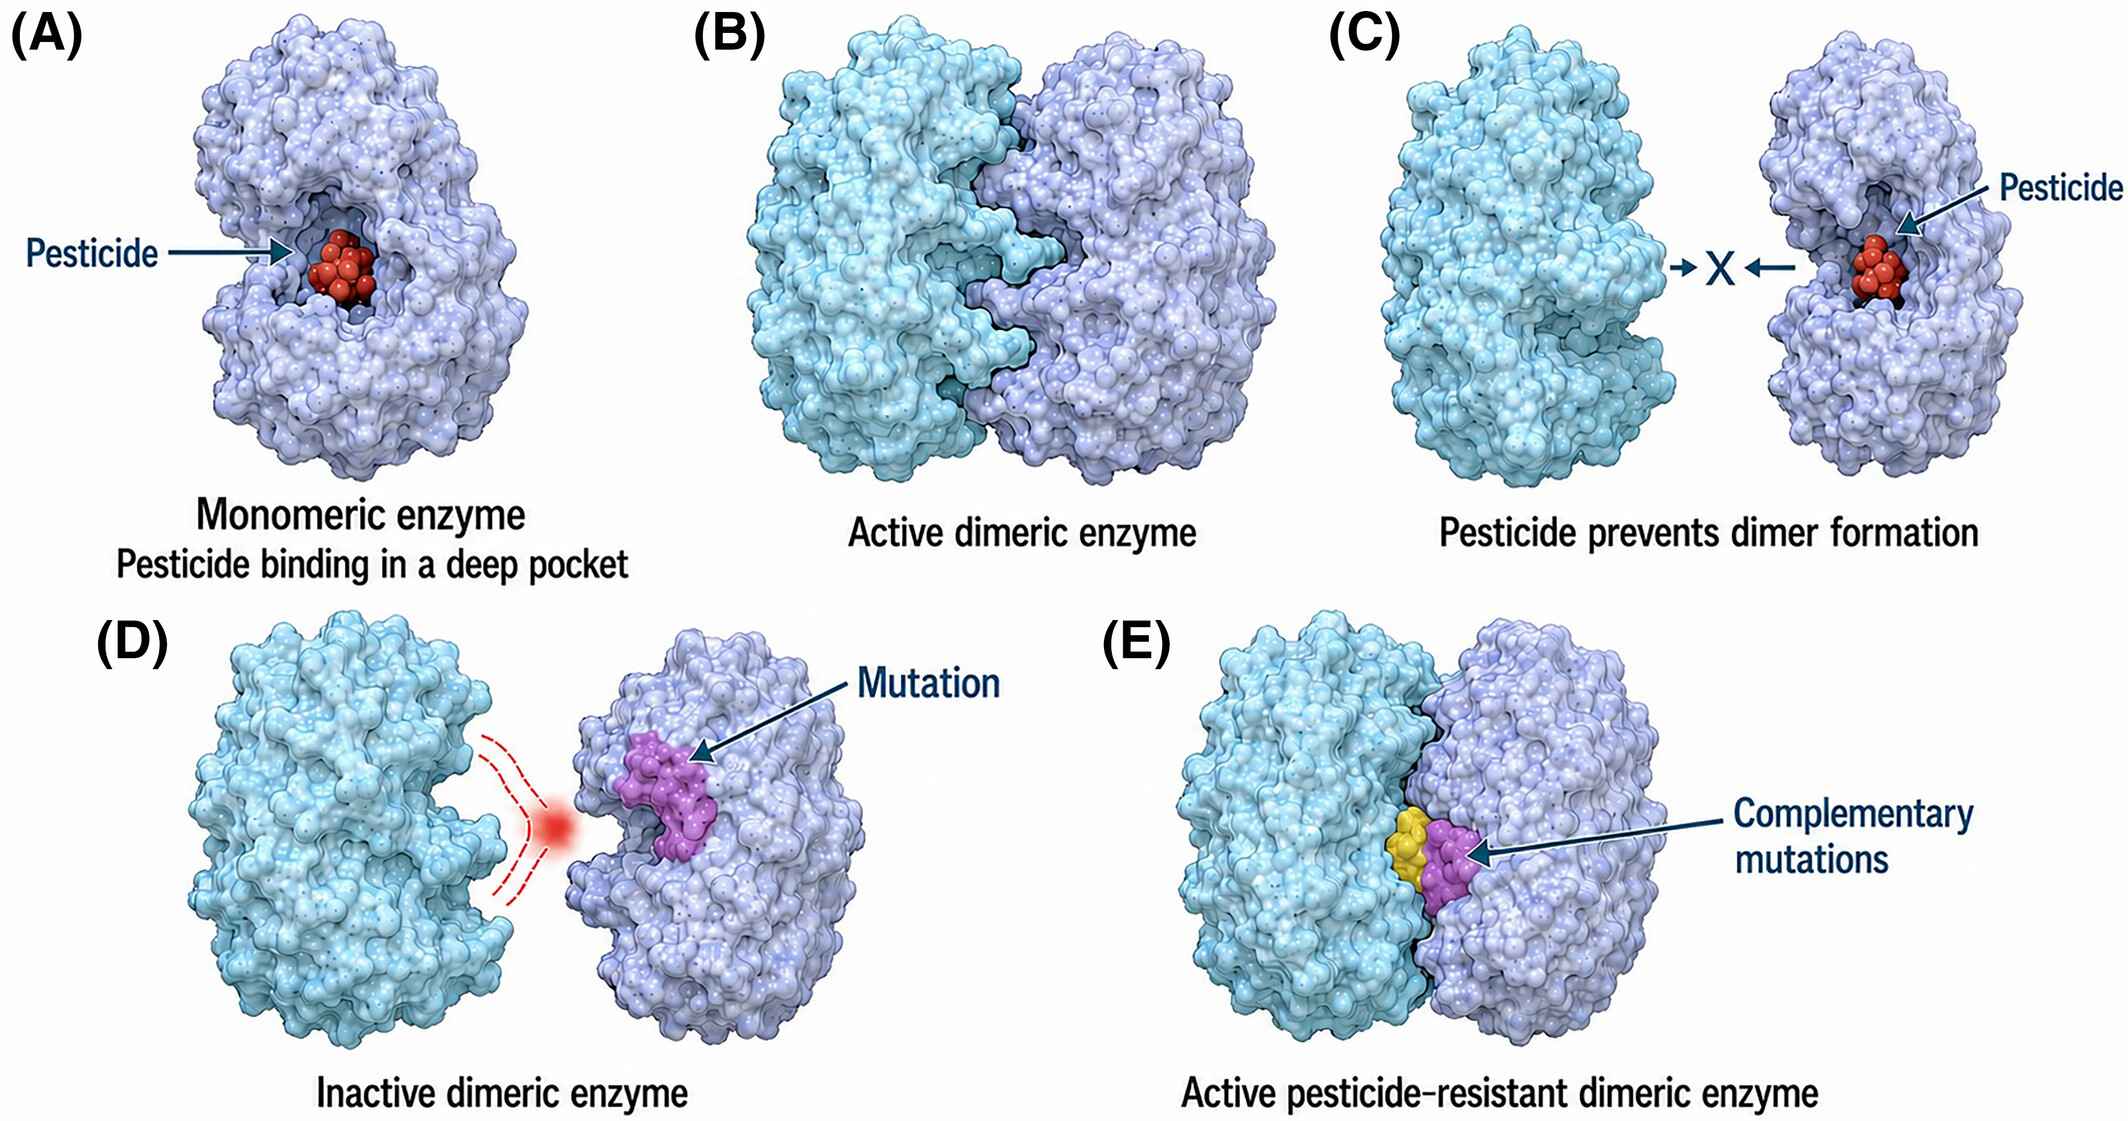
Los investigadores presentan dos estrategias. La primera consiste en inhibir proteínas con funciones diferentes. La segunda consiste en interrumpir las interacciones entre proteínas o entre subunidades de una misma proteína.
El herbicida rimisoxafen se presenta como un ejemplo de un compuesto que actúa sobre dos dianas. La molécula inhibe la fitoeno desaturasa y la solanesil difosfato sintasa, enzimas esenciales para la biosíntesis de carotenoides. Sin embargo, los investigadores señalan la falta de información sobre el origen intencional o accidental de esta doble actividad.
La combinación de dianas requiere concentraciones inhibitorias similares en ambas enzimas. Si una de ellas presenta una sensibilidad significativamente mayor, la diana más sensible determinará la dosis aplicada en el campo. En esta situación, la segunda diana contribuye poco al control y la reducción de la presión selectiva para la resistencia.
La velocidad de acción también influye en el resultado. Un mecanismo rápido, como la inhibición de la protoporfirinógeno oxidasa (PPO), antagonizaría un mecanismo lento, como la inhibición de la acetolactato sintasa (ALS), ambos presentes en la misma molécula. La relación se invierte entre los inhibidores del fotosistema II y la hidroxifenilpiruvato dioxigenasa (HPPD), que presentan sinergia, lo que haría atractiva una molécula que actuara sobre ambos objetivos.
La interacción llega a los objetivos ya comprometidos.
Otra vía implica moléculas capaces de impedir la asociación de subunidades proteicas. Ciertas enzimas dependen de esta interacción para funcionar. Una mutación capaz de impedir la unión del agente perjudicial también podría comprometer la formación de la enzima activa.
En este escenario, la resistencia requeriría mutaciones complementarias en diferentes componentes proteicos. Los investigadores consideran que esta combinación es menos probable que las alteraciones en un único sitio de unión.
Esta estrategia resultaría de particular interés para las especies ya afectadas por la resistencia. Las malas hierbas resistentes a los inhibidores de la ALS seguirían siendo susceptibles a un compuesto que bloquea la asociación entre las subunidades de la enzima, dado que los sitios de unión difieren de los actuales. Un estudio del que Gressel es coautor describe moléculas diseñadas para interrumpir la interacción entre la O-acetilserina sulfhidrilasa y la serina acetiltransferasa, un paso necesario para la síntesis de cisteína en las plantas.
La industria farmacéutica allanó el camino al desarrollar compuestos que actúan sobre las interfaces de las proteínas, que se consideraban inaccesibles debido a que poseen regiones de unión poco profundas, a diferencia de las cavidades profundas que aprovechan los fármacos convencionales.
La abundancia de proteínas influye en la eficacia.
La cantidad de la proteína objetivo representa otro factor importante. Las enzimas muy abundantes pueden requerir dosis elevadas para lograr niveles suficientes de inhibición. Un compuesto desarrollado contra la rubisco, la proteína más abundante en las plantas verdes, requeriría cantidades inviables para controlar las malas hierbas.
Los científicos citan la enzima acetolactato sintasa (ALS) como contraejemplo. Su concentración en las hojas es aproximadamente 36 veces menor que la de la cetol reductasa isomerasa (KARI) y cuatro veces menor que la de la dihidroxiácido deshidratasa (DHAD), las otras dos enzimas de la vía de los aminoácidos de cadena ramificada. Esta baja abundancia podría contribuir a la eficacia de ciertos herbicidas en dosis de tan solo unos gramos por hectárea.
Ninguna de las dos enzimas más abundantes produjo inhibidores comerciales, a pesar de los buenos resultados obtenidos en ensayos in vitro. Los autores también sugieren que los factores de transcripción, proteínas de muy baja abundancia, podrían ser posibles dianas terapéuticas.
El aumento de la producción de la proteína objetivo es también un mecanismo de resistencia conocido. Algunas malezas han desarrollado resistencia al glifosato mediante la amplificación genética, un proceso responsable del aumento de la cantidad de la enzima EPSPS. Mecanismos similares ocurren con los inhibidores de la ACCasa y los fungicidas.
Los investigadores también recomiendan evitar objetivos con vías metabólicas alternativas. La presencia de enzimas capaces de compensar la inhibición puede preservar la función del organismo y comprometer el control. La biosíntesis de ascorbato, que se produce a través de tres rutas distintas en plantas e insectos, ilustra este problema.
La estructura química interfiere con la resistencia metabólica.
La selección de la estructura química merece una atención similar. Según el artículo, más de dos tercios de los plaguicidas registrados son heterociclos hidrofóbicos construidos sobre unos pocos esqueletos químicos comunes. Cuando surge una molécula prometedora, la industria suele transferir el grupo activo a otros esqueletos de la misma categoría.
Estas características pueden favorecer la degradación por enzimas asociadas a la resistencia metabólica, especialmente las glutatión transferasas y las monooxigenasas del citocromo P450.
Los investigadores señalan diferencias en compuestos hidrófilos como el glifosato, el glufosinato y el paraquat. Según el análisis, a pesar de su uso prolongado, estos herbicidas no presentan una resistencia metabólica significativa.
En el caso de los insecticidas, los enlaces éster pueden facilitar su degradación por esterasas. El estudio recomienda evitar estructuras susceptibles a estas enzimas durante el desarrollo de nuevas moléculas.
La recomendación también se aplica a los plaguicidas basados en péptidos. Si bien estos pueden ser útiles para combatir nuevos agentes patógenos, las proteasas pueden degradarlos. Las estructuras cíclicas, los aminoácidos D y los aminoácidos no esenciales representan alternativas para aumentar su estabilidad.
La inhibición parcial debe producir un efecto letal.
Otro criterio establece la necesidad de verificar si la inhibición parcial del objetivo provoca la muerte del organismo. La eliminación completa de una enzima en experimentos genéticos no garantiza una eficacia similar con la aplicación de un plaguicida. Los autores recomiendan realizar pruebas con interferencia de ARN bajo un promotor inducible, que reducen solo una parte de la proteína objetivo y se aproximan a las condiciones reales de uso.
Los investigadores destacan la importancia de los compuestos capaces de desencadenar la acumulación de sustancias tóxicas. Los herbicidas inhibidores de la protoporfirinógeno oxidasa (PPO), por ejemplo, provocan la acumulación de protoporfirina IX. En presencia de luz y oxígeno, esta sustancia promueve la formación de oxígeno singlete, que es altamente tóxico para las células.
Otros herbicidas presentan efectos similares mediante la producción de especies reactivas de oxígeno, como ocurre con el paraquat y el diquat, o mediante la acumulación de metabolitos fitotóxicos, como se observa con los inhibidores de la ALS y el glifosato. Estos procesos permiten que se produzcan efectos letales incluso sin la inhibición completa de las proteínas diana.
La similitud con los mamíferos no es un criterio de eliminación.
La seguridad también forma parte de los criterios propuestos, en una formulación distinta a la adoptada por parte de la industria. Varias empresas exigen que el objetivo no exista en mamíferos. Gressel y Duke consideran este requisito demasiado restrictivo y señalan que los objetivos de herbicidas comerciales pertenecientes a 10 de los 25 grupos de la clasificación del Comité de Acción contra la Resistencia a los Herbicidas (HRAC) tienen ortólogos en mamíferos.
Según los autores, basta con que la región de unión sea suficientemente diferente de la estructura correspondiente en mamíferos, una condición que las herramientas moleculares actuales permiten predecir. Esta alternativa amplía el abanico de dianas disponibles sin generar barreras regulatorias. Los compuestos que actúan sobre las tubulinas de plantas y hongos, así como sobre la dihidroorotato deshidrogenasa, ilustran esta situación.
Otro requisito es la similitud de la región de conexión entre especies de importancia agrícola, condición necesaria para que el mercado justifique la inversión. Entre los grupos mencionados se encuentran las malas hierbas de las familias Poaceae y Amaranthaceae, los insectos de los órdenes Lepidoptera y Coleoptera, y los hongos del género Fusarium. Se considera insuficiente tomar decisiones de desarrollo basadas en una sola especie modelo, como Arabidopsis.
Sin embargo, Gressel y Duke destacan la existencia de mecanismos de resistencia adicionales, como la exclusión, la expulsión, la compartimentalización en vacuolas y la unión a componentes de la pared celular. La combinación gradual de estos mecanismos puede aumentar la tolerancia de la población, un proceso que los autores asocian con el uso de dosis reducidas.
El estudio también recomienda evaluar la penetración de los compuestos en los organismos, su llegada a las células diana, su persistencia ambiental y la disipación de residuos en los cultivos antes de la cosecha. Estos factores influyen en la viabilidad comercial y la seguridad de los productos (doi 10.1002/ps.71458).
Compartir
Newsletter Cultivar
Reciba las últimas noticias sobre agricultura en su correo electrónico
Newsletter Cultivar
Reciba las últimas noticias sobre agricultura en su correo electrónico